研究纳入MSK-IMPACT 连续测序的结直肠癌队列,按MSS、MSI-H、POLE/POLD1超突变分层。 核心方法:
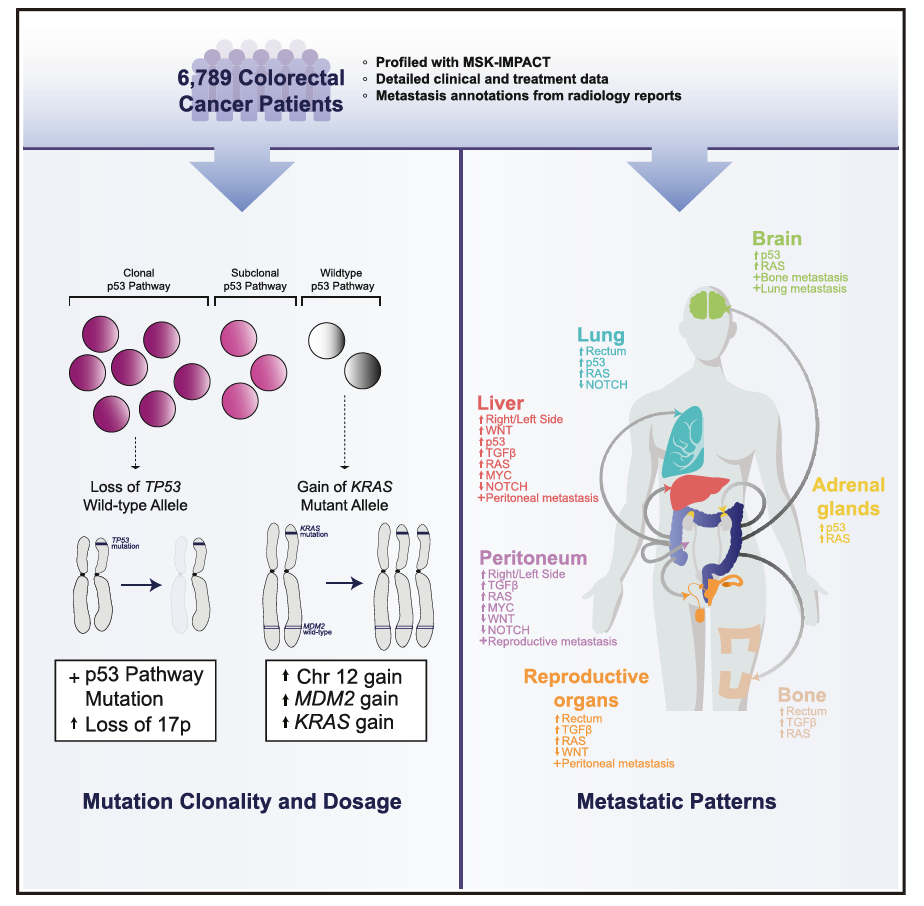
图1. Graphical Abstract——本研究总体设计:从6789例结直肠癌患者到器官特异性转移风险模型。 1️⃣ 克隆性驱动与等位基因失衡:转移能力的早期来源 在MSS结直肠癌中,TP53、APC、KRAS、PIK3CA 等高频驱动突变多为克隆性,即存在于多数肿瘤细胞中。研究进一步显示,除“有无突变”外,突变等位基因状态同样关键:
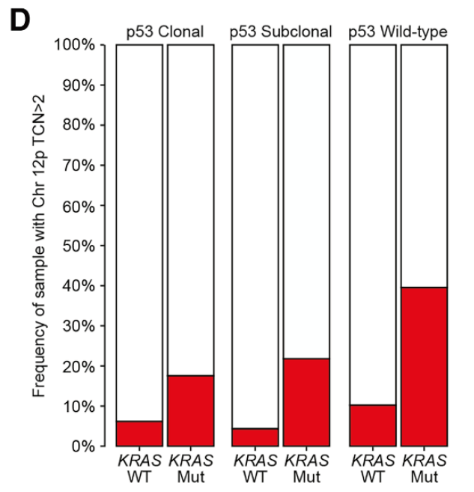
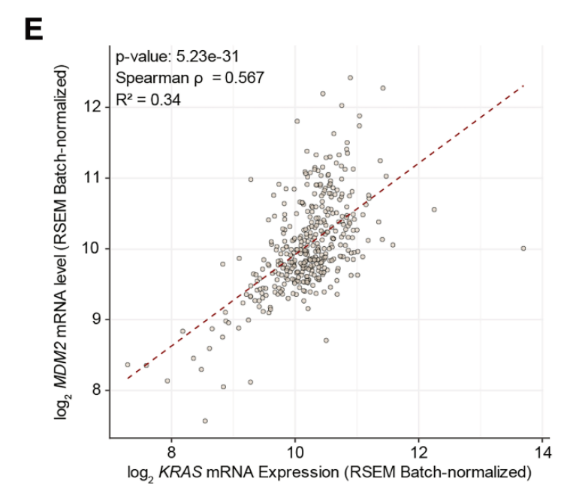
在TP53野生型MSS肿瘤中,KRAS突变等位基因失衡常伴随12p增益,并延伸至 12q(MDM2)共扩增,形成KRAS–MDM2共增益。该现象提示:部分TP53野生肿瘤可能通过 MDM2 扩增部分代偿 p53 通路约束,为后续进化提供选择优势。
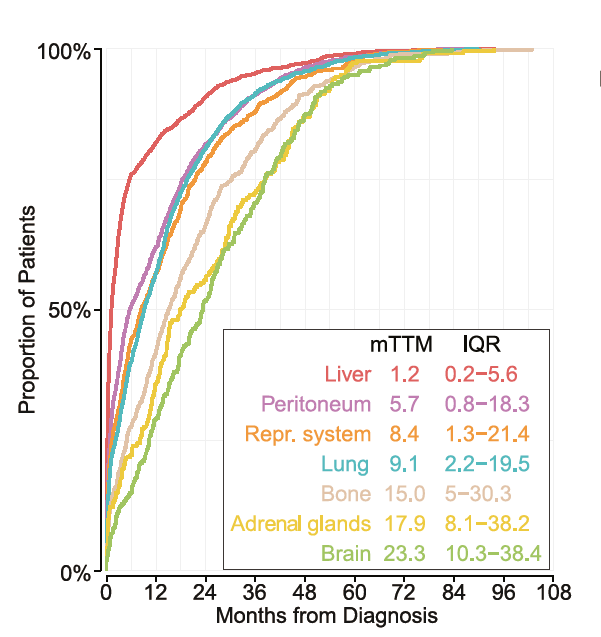
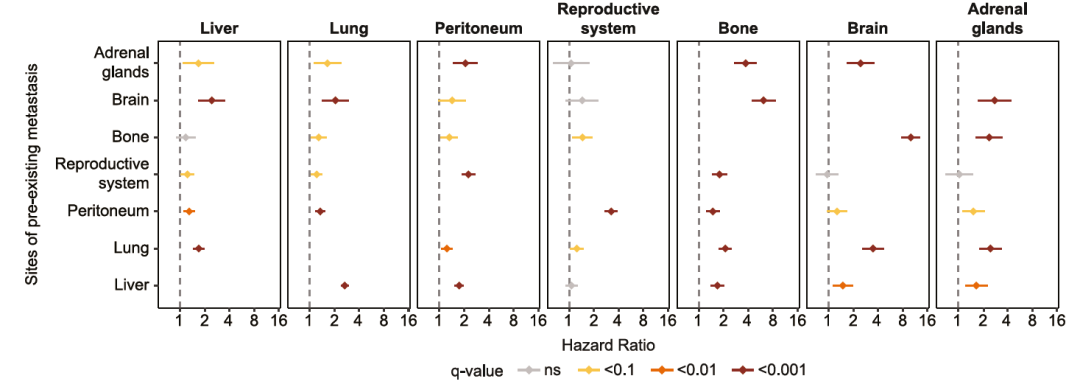
📊图2(Figure D、E). 下图:TP53野生型MSS CRC中KRAS突变伴12p增益,MDM2(12q)同步升高;上图:外部队列中 KRAS与MDM2表达正相关,TP53野生型肿瘤MDM2表达更高。 2️⃣转移并非随机:时序明确、器官成簇 基于NLP提取的7个部位转移信息,MSS结直肠癌呈现稳定时序:肝转移最早,腹膜、生殖系统、肺居中,骨转移较晚;脑与肾上腺为晚期事件,其中脑转移中位约23.2个月(图3未展示其曲线)。 转移部位并非独立发生,而是形成特征性聚类:①生殖系统+腹膜;②肾上腺+脑+骨;③肝+肺。这提示“转移靶器官”由原发灶分子特征与靶器官微环境共同筛选。
📊 图3. MSS结直肠癌转移时序:肝最早,腹膜、生殖系统、肺居中,骨较晚;脑和肾上腺为晚期事件(脑转移中位约23.2个月,图3未展示其曲线)。
📊图4. 转移共现与集群:生殖系统+腹膜、肾上腺+脑+骨、肝+肺。 3️⃣ 器官特异性转移风险模型:从机制到随访决策 研究将原发灶位置与通路级基因组特征整合,建立多器官转移风险评分:
该模型的价值不在于“预测一定会转移”,而在于将随访资源前置到最高危亚群。
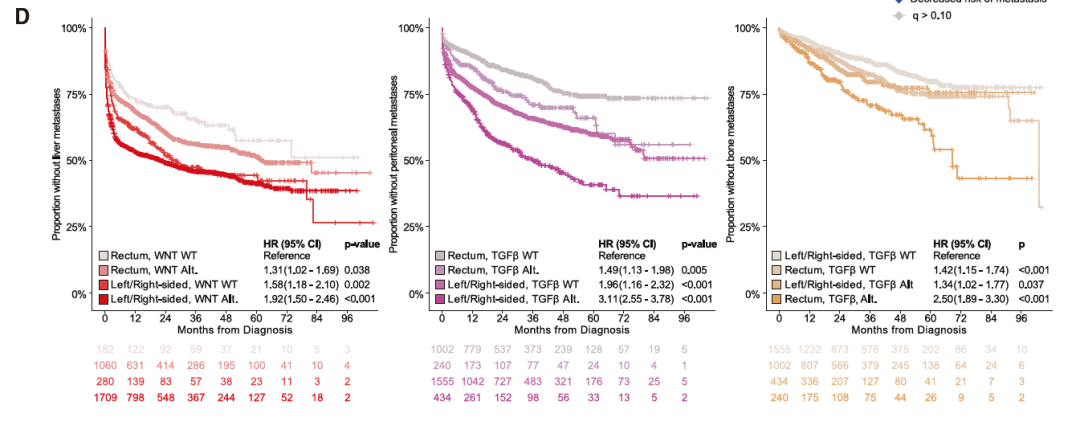
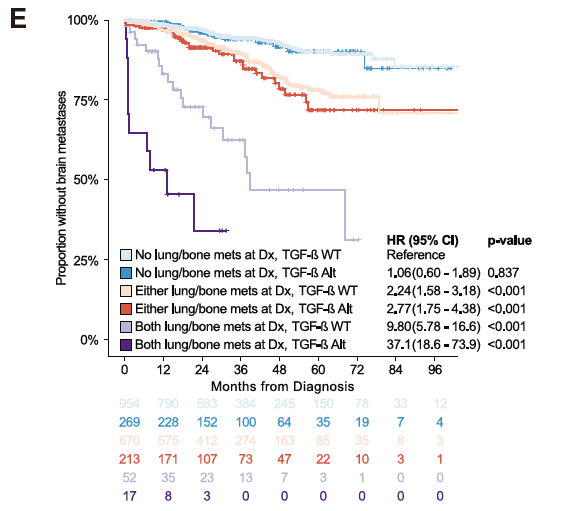
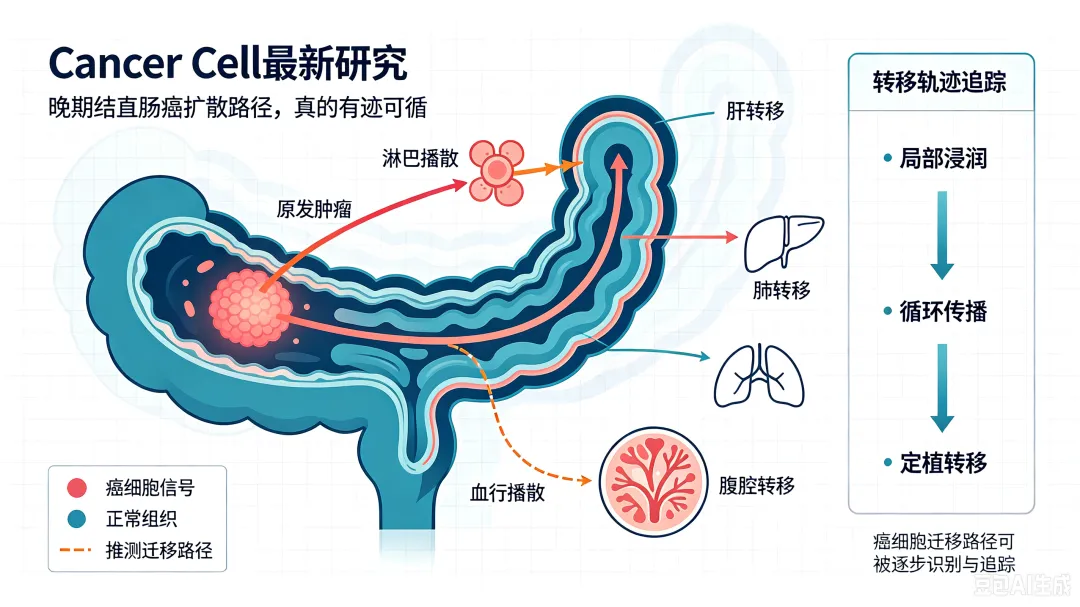
📊图5(Figure 6D、6E). 上:原发部位 × WNT 状态分层肝转移风险,非直肠原发且 WNT 激活者肝转移风险最高;下:肺/骨转移背景下 TGF-β 改变显著升高脑转移风险。 随访可分层: 原发部位、既往转移部位和基因组特征可共同预测器官特异性转移风险 。 报告要细化:仅写“KRAS突变”不够,还应关注克隆性、突变剂量和等位基因失衡 。 机制可验证:KRAS等位基因失衡可能与MDM2 gain相关,提示潜在干预方向,但仍需前瞻性验证 。 模型待外验:器官特异性转移风险模型已提出,但临床推广仍需进一步验证 Manca等基于7000余例连续测序结直肠癌样本的整合临床-基因组分析表明,晚期结直肠癌转移并非完全随机,而是具有可描述的进化规律和器官特异性趋向。研究显示,克隆性驱动改变及致癌突变的等位基因失衡会增强复发性致癌事件的影响,而原发肿瘤部位、既往转移部位和基因组特征的整合,有助于预测器官特异性转移风险。在微卫星稳定型结直肠癌中,器官转移还表现出一定的时序性,例如脑和肾上腺转移更偏晚发生。这些结果为精准随访分层提供了依据,但其对实际临床决策的影响仍需进一步验证。 这篇研究最打动人的地方,是它把“转移”从一个模糊的终末结果,推进成了一个可拆解的演化过程。真正决定肿瘤行为的,往往不是某个突变“有没有”,而是它在克隆竞争中有没有取得优势。如果原发部位、基因组特征和转移史真的能整合成器官特异性风险模型,未来的随访思路可能不再“一刀切”,而是根据每位患者的风险分层做更精准的监测。 一句话收尾:结直肠癌的转移,并不是完全随机扩散——至少从这篇研究看,它有路径,也有信号。
注:本文内容仅供行业动态参考,不构成任何投资建议或临床医疗决策依据。 |

 /3


 浙公网安备33010802005999号