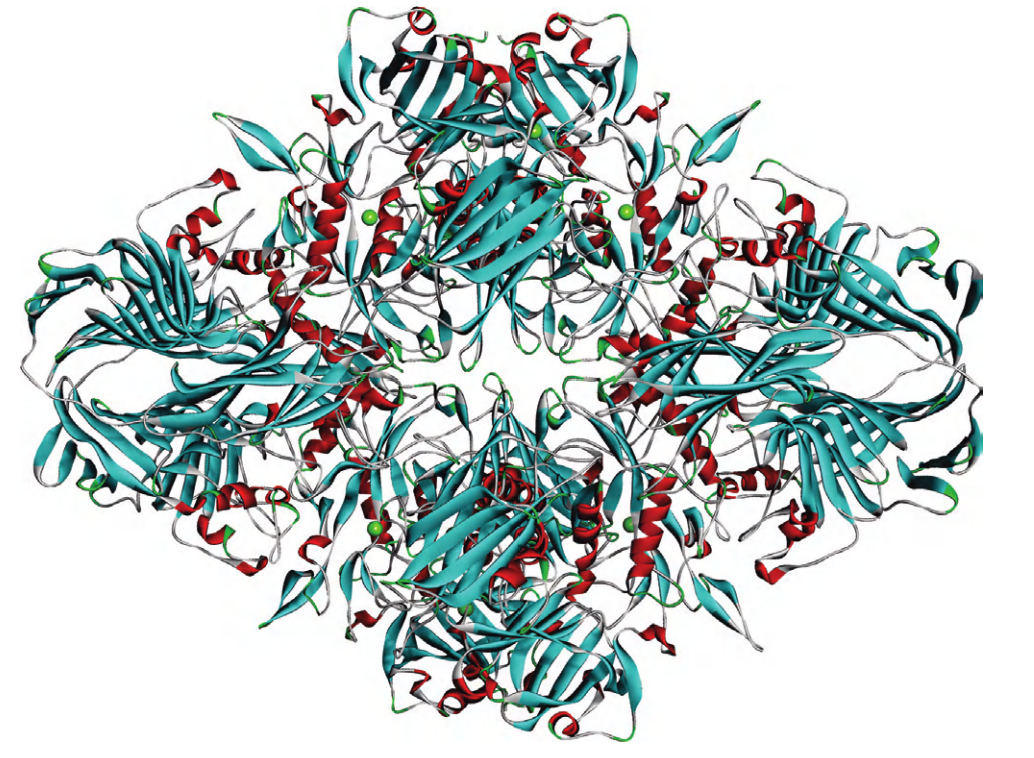
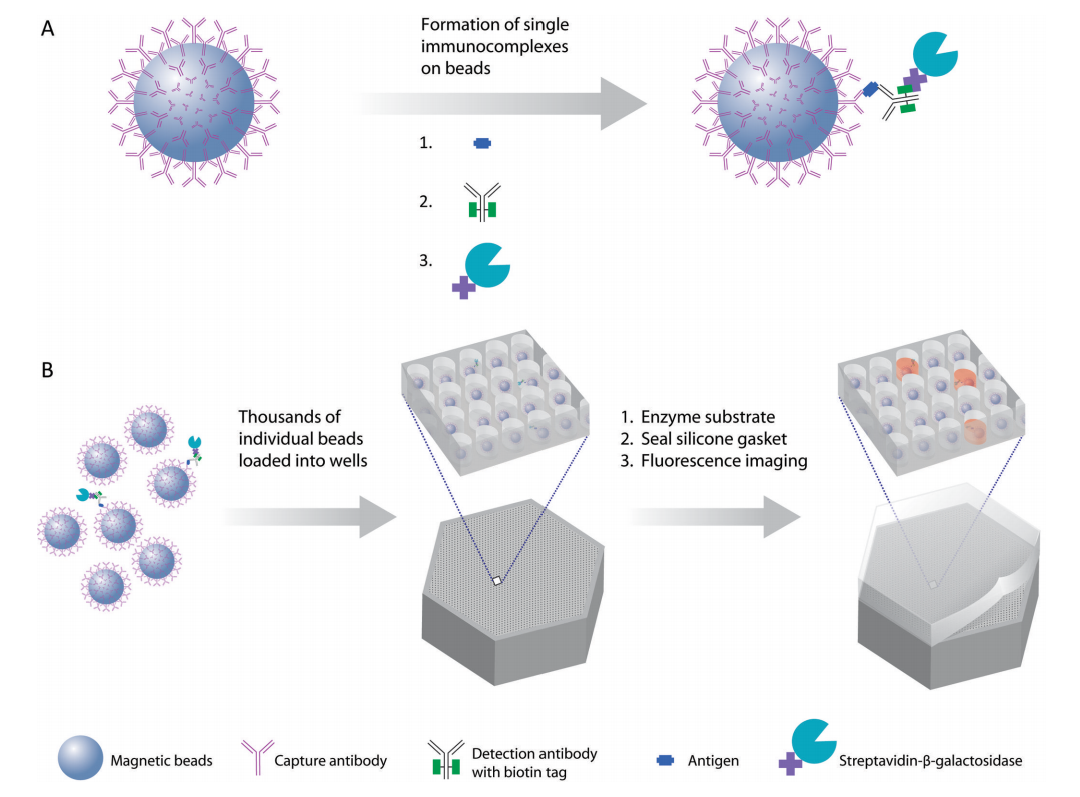
Simoa(Single Molecule Array,单分子阵列技术)是一种超灵敏的数字化免疫检测技术,也被称为数字ELISA。 传统ELISA受限于信号放大原理,难以准确检测超低浓度的生物标志物。Simoa的核心突破在于,它将传统的“模拟信号”检测转变为“数字信号”计数,通过物理隔离和单分子计数,实现了对极微量目标分子的绝对定量。其检测限可达飞摩尔(fg/mL)级别,灵敏度相比传统ELISA平均提高了1000倍以上。 传统的ELISA往往选用辣根过氧化物酶HRP或碱性磷酸酶ALP,极少为选用β半乳糖苷酶(β-galactosidase,β-Gal)。而Simoa如此高灵敏的检测,为什么会选用β半乳糖苷酶作为报告酶? 一:β-Gal的基本特点与酶学特性 1. 来源与分子结构 β-半乳糖苷酶(β-galactosidase,简称β-Gal,EC[3.2.1.23])是一种广泛存在于微生物、植物与动物体内的糖苷水解酶,因其独特的催化特性与稳定性,成为了生物检测领域中最重要的工具酶之一。 β-Gal的来源十分广泛,不同来源的酶在性质上存在一定差异:微生物来源的β-Gal是目前应用最广泛的类型,其中大肠杆菌(E. coli)来源的β-Gal研究最为透彻,也是Simoa平台所使用的标准酶。大肠杆菌来源的β-Gal是一种同源四聚体蛋白,总分子量约为540 kDa,每个单体为135 kDa,四个单体共同组装形成具有四个独立活性位点的功能酶。这种四聚体的结构赋予了酶极高的结构稳定性,使其在复杂的检测环境中能够维持催化活性。酶以二价金属作为辅因子,需要螯合的Mg²⁺离子来维持活性位点的构象。
图:β-Gal蛋白质结构 2. 催化反应机制 β-Gal的核心功能是催化β-半乳糖苷键的水解,其催化机制属于双取代的酸碱催化机制:3. 酶动力学与活性影响因素 •底物特异性:该酶能够特异性识别β-半乳糖苷键,对天然底物乳糖以及人工合成的荧光底物如:Resorufin-β-D-galactopyranoside(RGP)、Fluorescein di-β-D-galactopyranoside(FDG)等都具有良好的催化活性。 二:Simoa单分子检测平台的技术原理 Simoa是一种能够实现单分子水平生物分子检测的超高灵敏度技术,其核心原理是通过微纳加工技术将单个酶标记的免疫复合物隔离在飞升级(fL)的微小反应腔中,实现信号的局部富集。 核心技术逻辑 •免疫捕获与标记:将目标蛋白捕获在2.7 μm的磁性微球上,通过双抗夹心免疫反应,结合生物素标记的检测抗体,最终通过链霉亲和素与β-半乳糖苷酶的偶联物(SβG)完成标记。 •微井隔离:将标记后的微球与酶底物混合后,加载到包含数十万个体积仅为50 fL的微井阵列中,每个微井最多容纳一个微球,随后使用油相密封微井,将每个微井隔离为独立的反应单元。
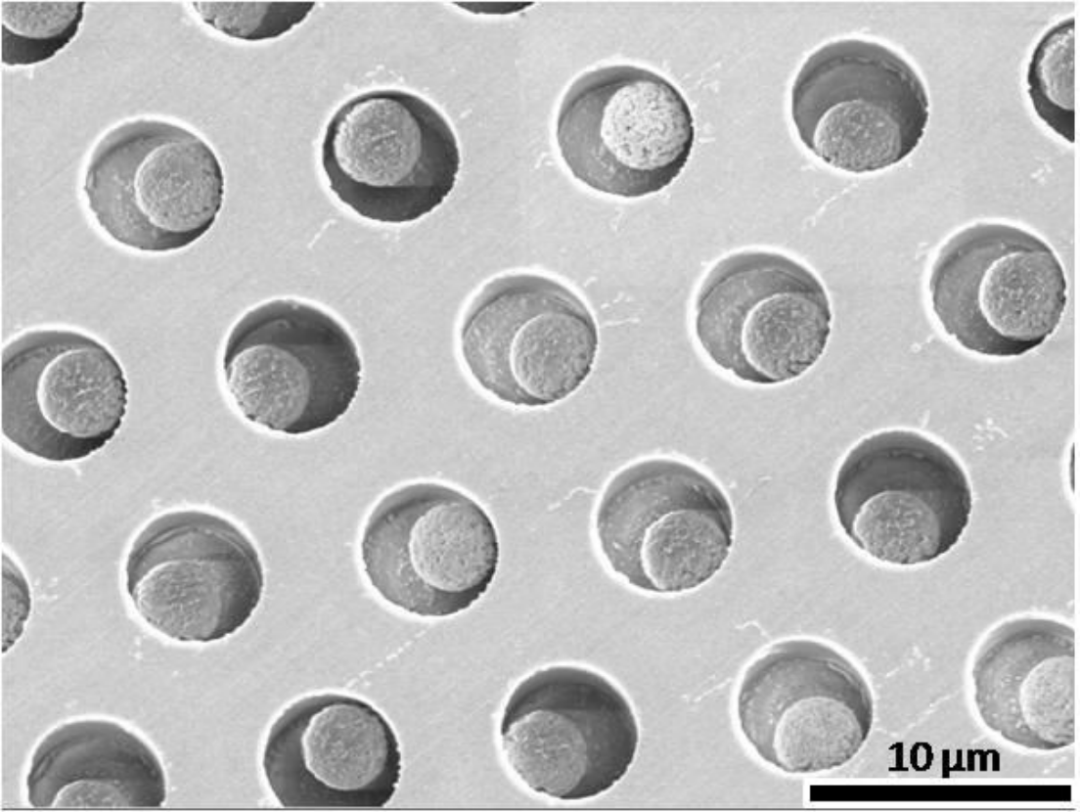
图:Simoa微井阵列的扫描电镜图,每个微井的体积仅为50 fL,能够将单个酶分子完全隔离,实现信号的局部富集 •信号积累与成像:单个酶分子在封闭的微井中催化底物生成荧光产物,由于微井体积极小,产物浓度在几分钟内即可快速升高到可检测的水平,通过荧光成像区分 “阳性”(有酶活性,产生荧光)与 “阴性”(无酶活性,无荧光)的微井。
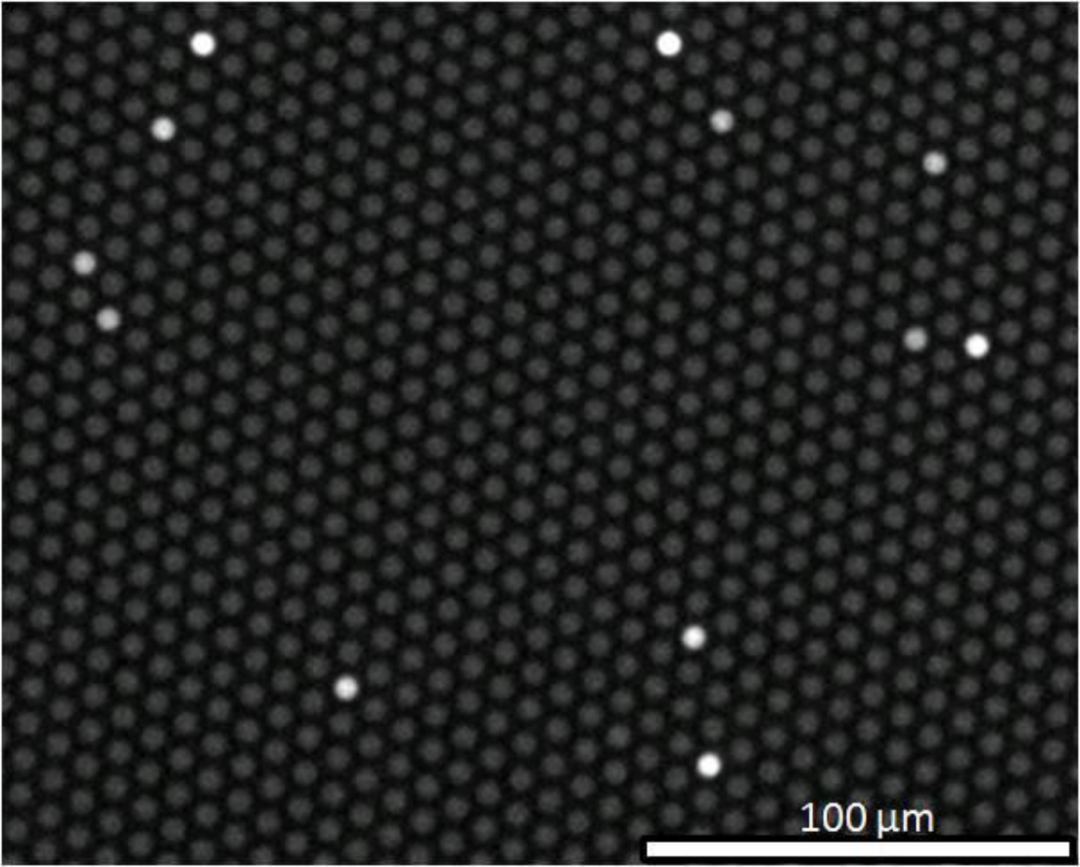
图:Simoa 平台荧光成像结果,仅携带单个β-半乳糖苷酶的微井会产生明显的荧光信号,通过计数阳性微井即可实现单分子水平的定量 •数字定量:通过计数阳性微井的比例,结合泊松分布统计,即可实现目标蛋白的绝对定量,其灵敏度比传统ELISA高出1000倍以上,检测下限可达fg/mL级别。
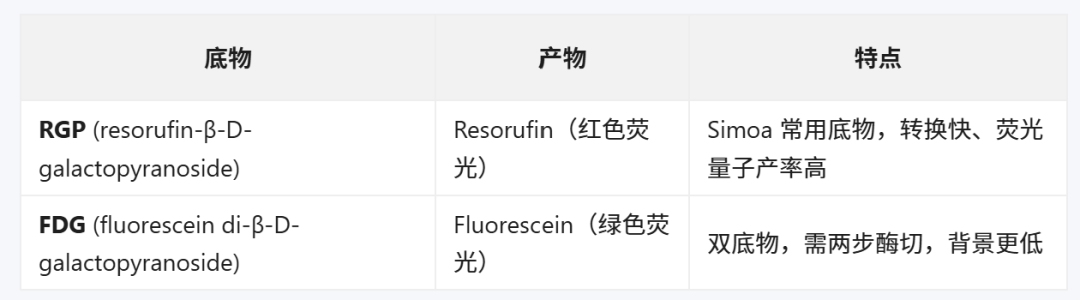
图:Simoa平台检测原理 注:该部分内容及图片来自文献[1] 三:Simoa选择β-Gal作为报告酶的核心原因 1. 极高的催化效率,支持单分子信号的快速积累 单分子检测,检测的不是酶分子本身,而是它催化产生的大量荧光产物。其核心挑战在于,单个酶分子需要在有限的时间内,在微小的反应腔中生成足够多的产物,使得产物浓度能够达到仪器的检测阈值。 β-Gal高达600~1000 s⁻¹的转换数,高kcat使得单个酶分子在短时间(数秒至数分钟)内即可生成数万个产物分子,在50 fL的微井中,这足以将产物浓度提升到μM级别,完全满足荧光检测的需求。 同时,β-Gal的催化效率在微井的隔离环境中与体相溶液完全一致,没有出现效率损失,这保障了信号的稳定积累。 2. 优质的荧光底物与产物特性—低背景、高信噪比 β-Gal拥有多种成熟且性能优良的荧光底物:
β-Gal的底物RGP本身无荧光,而其催化产物试卤灵Resorufin是一种强荧光分子,具有高量子产率,荧光信号强,且光稳定性好,不容易发生光漂白等特点,能够支持长时间的成像检测。 同时,Resorufin是带电荷的极性分子,无法穿过密封微井的油相层,也不会在微井之间扩散,这保障了每个微井的信号都是独立的,不会出现信号泄露或交叉干扰,确保了计数的准确性。 3. 极低的内源性背景干扰 在临床检测中,样本通常是血清、血浆等复杂的生物样本,内源性的酶活性是背景干扰的主要来源。 β-Gal在人体样本中几乎没有内源性活性,这意味着即使在复杂的血清样本中,也不会出现非特异性的背景荧光,极大地降低了检测的背景噪音,保障了单分子信号的信噪比。 这一点对于单分子检测至关重要,因为单分子的信号本身非常微弱,任何背景干扰都可能掩盖真实的信号。 4. 无需额外辅因子,反应体系简单稳定 β-Gal的催化反应仅需要底物分子即可完成,无需任何额外的共底物或辅因子。其常用的荧光底物RGP具有极高的稳定性,在常温下可以长期保存,不会自发分解,也不会在没有酶的情况下产生荧光。 这一特性使得Simoa的反应体系非常简单,密封后的微井中,反应可以持续进行数十分钟,不断积累产物,无需担心底物的提前消耗或失活。 5. 与飞升级体积限制完美适配 Simoa的核心技术突破在于将单个磁珠(携带零个或一个酶标记免疫复合物)封闭在50 fL的微孔中。这个设计对酶的选择有严格要求: β-Gal四聚体的分子量高达540 kDa,体积较大,在单分子检测中更容易被限制在飞升级微反应器;高kcat确保快速产物积累,在小体积中快速积累可检测荧光;底物RGP在生理条件下稳定,产物Resorufin在油封微孔中保持原位,不扩散到孔外;且已有大量单分子酶学研究验证,β-Gal单分子具有良好的活性均一性。 HRP与ALP可能的潜在的问题: HRP:共底物的不稳定性:HRP的催化反应需要过氧化氢(H₂O₂)作为共底物,但H₂O₂在水溶液中会自发分解,同时还会氧化HRP本身,导至酶在微井中快速失活,无法持续催化反应。反应机制:特殊的两步氧化还原机制,在单分子检测的可操作性,可能存在限制。内源性干扰:样本中的血红蛋白等物质具有天然的过氧化物酶活性,会导至非特异性的背景信号,干扰检测结果。 ALP:内源性干扰:ALP在人体血清中广泛存在,肝型、骨型、肾型等多种ALP同工酶在临床样本中具有很高的活性,这可能会导至较高的背景信号掩盖单分子的检测信号。反应条件苛刻:ALP的催化反应需要高pH的缓冲液(通常 pH>9),同时需要Mg²+作为辅因子,这与免疫检测的生理缓冲条件不匹配,增加了体系的复杂性。 总结:β-半乳糖苷酶凭借其超高的催化转换速率 + 优质荧光底物 + 成熟的研究体系 + 在飞升级体积中的卓越单分子信号放大能力,成为Simoa技术平台实现超高灵敏度检测的最优选的酶报告分子。 |
 /3


 浙公网安备33010802005999号